
Aucune succulente ne traîne autant de légendes derrière elle que le dragonnier des Canaries. Les Romains prenaient sa sève écarlate pour du cinabre, et les encyclopédistes médiévaux affirmaient qu’il s’agissait littéralement du sang des dragons tués par les éléphants. Quand le navigateur normand Jean de Béthencourt aborda l’archipel en 1402, les Guanches lui échangèrent des gouttes séchées de cette résine grenat contre des outils de fer — un troc dans lequel la résine valait cent fois le métal.
Dracaena draco appartient au genre Dracaena, dont il est de loin l’espèce la plus spectaculaire en culture de plein air. C’est un relicte tertiaire : ses ancêtres couvraient le pourtour méditerranéen à l’Oligocène, et il ne subsiste plus aujourd’hui à l’état sauvage que sur quelques îles atlantiques et dans un unique canyon marocain. Paradoxalement, cette espèce rare dans la nature est devenue banale dans les jardineries du Midi, où l’on vend chaque année des milliers de jeunes sujets dont peu atteindront l’âge adulte sous nos climats.
Comment reconnaître Dracaena draco ?
Dracaena draco est une monocotylédone arborescente à feuillage persistant, qui atteint 10 à 15 mètres de hauteur — exceptionnellement plus de 20 mètres — pour une circonférence de tronc dépassant 5 mètres chez les très vieux sujets.
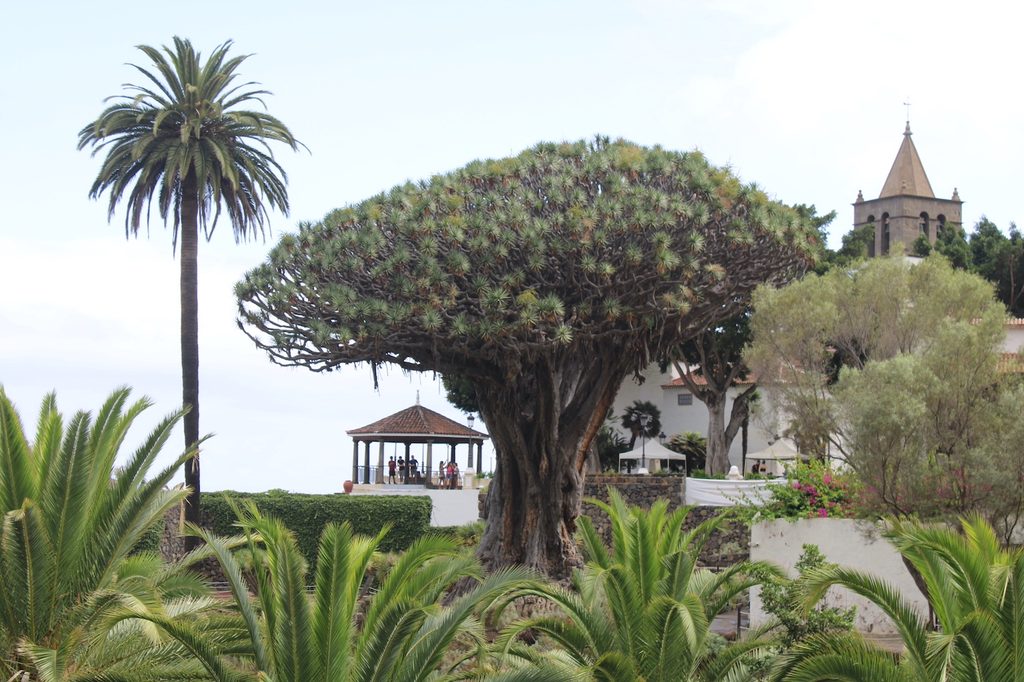
Un mode de croissance unique. La plante se développe d’abord en colonne unique, non ramifiée, pendant dix à quinze ans. Puis le méristème apical se transforme en inflorescence terminale : la tige cesse définitivement de s’allonger. Après la floraison, une couronne de bourgeons axillaires prend le relais et l’arbre se ramifie pour la première fois. Chaque branche recommencera le même cycle. Ce mécanisme, répété pendant des siècles, produit la silhouette caractéristique en parasol, une coupole hémisphérique dense où chaque extrémité de rameau porte une rosette de feuilles rigides.
Ce « port dracoïde » fournit une méthode d’estimation de l’âge : on compte le nombre de générations de ramification depuis la base jusqu’à la périphérie de la couronne et on multiplie par dix à quinze ans. La méthode reste approximative, l’intervalle entre deux floraisons variant avec le climat, la nutrition et l’exposition.
Un tronc sans cernes. En tant que monocotylédone, Dracaena draco ne possède pas de cambium vasculaire véritable. Son tronc s’épaissit par croissance secondaire anormale, dont il constitue l’exemple d’école : une zone méristématique particulière, le « cambium des monocotylédones », se forme dans le cortex interne et produit vers l’intérieur des faisceaux vasculaires secondaires noyés dans du parenchyme. Il en résulte un « bois » sans aucun cerne annuel — raison pour laquelle l’âge des sujets célèbres reste indéterminable.

L’écorce est gris argenté, lisse chez le jeune sujet, plus rugueuse et écailleuse avec l’âge. Les très vieux arbres émettent des racines adventives aériennes qui descendent le long du tronc et des branches maîtresses, accentuant leur aspect monstrueux.
Feuilles, fleurs et fruits. Les feuilles sont linéaires-lancéolées, sessiles, longues de 60 à 120 cm pour 3 à 4 cm de large, glauques à vert grisâtre, coriaces, groupées en rosettes terminales denses. Contrairement à celles de nombreux yuccas, elles ne se terminent pas par un aiguillon piquant.
L’inflorescence est une panicule terminale lâchement ramifiée de 40 à 60 cm, émergeant au cœur de la rosette. Les fleurs, blanc verdâtre, campanulées, à tépales de 7 à 11 mm, sont groupées par quatre ou cinq et dégagent un parfum doux. Les fruits sont des baies globuleuses de 1 à 1,5 cm, rouge corail à orange à maturité, réunies en grappes pendantes, contenant une à trois graines. Elles sont disséminées par les oiseaux.
Hybridation entre espèces
Aucun hybride de Dracaena draco n’est documenté, ni en culture ni dans la nature. Les trois taxons infraspécifiques sont géographiquement isolés les uns des autres par des centaines de kilomètres d’océan, ce qui exclut tout échange naturel. À Grande Canarie, où Dracaena draco et Dracaena tamaranae coexistent, les deux espèces appartiennent à des lignées évolutives distinctes, occupent des étages de végétation différents et n’ont jamais été signalées en hybridation. Les sujets présentant un aspect intermédiaire relèvent presque toujours de la variabilité individuelle ou de conditions de culture particulières, non d’une origine hybride.
Confusions fréquentes
| Espèce | Ce qui la distingue |
|---|---|
| Dracaena cinnabari | Dragonnier de Socotra, couronne en champignon renversé nettement plus aplatie, feuilles plus courtes ; lignée est-africaine, non apparentée de près |
| Dracaena tamaranae | Endémique de Grande Canarie, 6 à 8 m seulement, port irrégulier et clairsemé, feuilles plus bleutées et carénées |
| Dracaena ombet | Afrique du Nord-Est et Arabie, port bifurqué, 2 à 8 m |
| Dracaena marginata | Le « dragonnier » d’appartement, malgache, feuilles étroites bordées de rouge, tiges grêles |
| Yucca gigantea | Feuilles terminées par un aiguillon acéré, inflorescence à fleurs blanches |
| Cordyline australis | Feuilles plus souples et plus étroites, tronc plus mince, croissance beaucoup plus rapide |
La confusion la plus fréquente en jardinerie reste celle avec les yuccas arborescents : l’absence d’épine terminale sur la feuille suffit à trancher.
Taxonomie
Linné décrit l’espèce en 1762 sous le nom d’Asparagus draco, avant de la transférer en 1767 dans le genre Dracaena qu’il vient d’ériger. La localité type, indiquée comme « India orientali », est erronée — confusion classique du XVIII<sup>e</sup> siècle pour les plantes macaronésiennes arrivées en Europe par les routes commerciales portugaises. Le lectotype est une planche de Clusius (1601), désignée par Bos en 1993.
Le nom de genre vient du grec δράκαινα (drakaina), « dragon femelle » ; l’épithète draco est le mot latin pour dragon.
L’espèce appartient à la famille des Asparagaceae, sous-famille des Nolinoideae — et non aux Agavoideae qui abritent Agave et Yucca. Les deux sous-familles sont réunies sur ce site sous le terme horticole d’« agavoïdes », en raison de leur port en rosette, de leur xérophytie et de leur usage architectural au jardin.
Trois sous-espèces, ou trois espèces ? Le traitement classique reconnaît trois sous-espèces allopatriques :
| Taxon | Aire | Auteurs |
|---|---|---|
| Dracaena draco subsp. draco | Canaries et Madère | Linné (1767) |
| Dracaena draco subsp. ajgal | Anti-Atlas, sud-ouest du Maroc | Benabid & Cuzin (1997) |
| Dracaena draco subsp. caboverdeana | Cap-Vert | Marrero Rodríguez & Almeida Pérez (2012) |
Rivas-Martínez et ses collaborateurs ont élevé les formes marocaine et capverdienne au rang d’espèces, respectivement Dracaena ajgal (2020) et Dracaena caboverdeana (2017). POWO accepte aujourd’hui ces deux binômes tout en conservant les combinaisons infraspécifiques, situation ambiguë. Les travaux de phylogéographie les plus récents (García-Verdugo et al., 2019 et 2020) continuent d’employer le cadre des sous-espèces, retenu ici. L’ADN plastidial confirme que les trois taxons forment un groupe monophylétique — le clade des dragonniers macaronésiens — qui n’est pas proche des dragonniers est-africains et arabiques malgré leur ressemblance.
Principaux synonymes : Asparagus draco L. (basionyme), Palma draco (L.) Mill., Stoerkia draco (L.) Crantz, Dracaena resinifera Salisb., Drakaina draco (L.) Raf., Dracaena yucciformis Vand., Dracaena boerhaavei Ten.
Noms vernaculaires : dragonnier des Canaries, dragonnier commun (français) ; drago (espagnol) ; dragoeiro (portugais) ; albero del drago (italien) ; Canary Islands dragon tree (anglais).

Dans la nature
La répartition de Dracaena draco au sens large dessine un arc discontinu dans l’Atlantique nord-est, des Açores (38° N) au Cap-Vert (15° N), avec une enclave continentale isolée au Maroc. L’habitat est partout le même : falaises rocheuses, ravins abrupts et forêts thermosclérophylles, sur substrats parfaitement drainés, dans des secteurs recevant 200 à 500 mm de précipitations annuelles. L’amplitude altitudinale va du niveau de la mer à environ 1 540 m pour les populations marocaines.
La sous-espèce type ne subsiste plus à l’état sauvage qu’en petites populations fragmentées : quelques centaines d’individus à Tenerife, une poignée à Madère, des sujets relictuels dans le Barranco de Buracas à La Palma. Elle a disparu de la nature à Grande Canarie et à Porto Santo. La sous-espèce ajgal, cantonnée à quelques kilomètres carrés de gorges du Jbel Imzi entre 1 100 et 1 540 m, compte pourtant plusieurs milliers d’individus : c’est, en nombre absolu, la population sauvage la plus importante de l’espèce. La sous-espèce caboverdeana occupe les falaises exposées au nord-est de Santo Antão, São Nicolau et Fogo, où elle capte l’humidité des alizés.
Le cas des Açores. Des dragonniers poussent à São Jorge et à Pico, mais aucun fossile de Dracaena n’y a jamais été trouvé, contrairement aux Canaries. Certains individus açoriens se rapprochent morphologiquement de la sous-espèce capverdienne, ce qui cadre avec une introduction par les navigateurs portugais avant 1500, à partir de semences prélevées à Madère et au Cap-Vert. La question n’est pas formellement tranchée, mais ces populations gardent un intérêt génétique certain.
Conservation. L’espèce est classée Vulnérable (VU) sur la Liste rouge de l’UICN, avec des effectifs en déclin de longue date. Son omniprésence dans les parcs et jardins donne une impression trompeuse d’abondance. Les menaces sont cumulatives : destruction de l’étage thermophile au profit de l’agriculture et de l’urbanisation, surexploitation historique de la résine — en 1810, le naturaliste Ledru estimait qu’il restait moins de cinquante dragonniers à Tenerife —, abroutissement des semis par les chèvres introduites, et probable disparition d’un oiseau disséminateur endémique. Pour la sous-espèce capverdienne, les modèles climatiques annoncent une contraction de l’habitat favorable de l’ordre de 28 % à l’horizon 2080. Dracaena tamaranae, à Grande Canarie, est quant à elle classée En danger critique (CR).
Les sujets monumentaux. Le plus célèbre est le Drago Milenario du Parque del Drago, à Icod de los Vinos, sur la côte nord de Tenerife : 17 à 21 m de hauteur, environ 20 m de circonférence à la base, plus de 300 branches maîtresses, une masse estimée à 140 tonnes, et un tronc creux de 6 m de haut accessible par une porte, ventilé artificiellement pour limiter les pourritures. Son âge a fait couler beaucoup d’encre — 6 000 ans selon certaines estimations du XIX<sup>e</sup> siècle, 2 500 ans selon une étude zurichoise de 1907, 350 ans seulement pour Mägdefrau en 1975 — les analyses modernes convergeant vers 800 à 1 000 ans. Il est classé monument national depuis 1917 et figurait sur le billet de 1 000 pesetas.
Le géant historique était cependant celui de La Orotava, mesuré par Alexander von Humboldt en 1799 : 21 m de haut, 14 m de circonférence, un intérieur creux dont les Guanches avaient fait un sanctuaire. Humboldt y voyait « l’un des plus anciens habitants de notre monde ». Il fut abattu par une tempête en 1867.


Culture
Le dragonnier des Canaries est paradoxalement l’un des arbres exotiques les plus faciles à réussir sous climat méditerranéen doux. Il tolère les sols pauvres, calcaires ou volcaniques, le plein soleil, la chaleur, les embruns et de longues périodes sèches.
Exposition. Plein soleil de préférence. Les jeunes sujets acceptent la mi-ombre mais s’étiolent et ramifient plus tard.
Sol. Le drainage prime sur tout le reste. Sol caillouteux, sableux, pouzzolane, terre de jardin allégée de gravier grossier. Les terres argileuses lourdes sont éliminatoires : c’est l’excès d’eau hivernal, bien plus que le froid, qui tue les dragonniers en pleine terre.
Arrosage. Faible à modéré la première année, pour installer le système racinaire, puis quasi nul en climat méditerranéen. Un sujet établi se passe d’irrigation estivale. En pot, laisser sécher complètement le substrat entre deux arrosages et suspendre presque totalement l’apport d’eau de novembre à mars.
Croissance et patience. Comptez une dizaine d’années pour obtenir 1,20 m de tronc, et quinze à vingt ans avant la première floraison et la première ramification. La couronne en parasol que l’on admire à Icod est l’œuvre de plusieurs siècles. C’est un arbre que l’on plante pour ses petits-enfants.
Culture en pot. Excellente solution partout où l’hivernage est nécessaire. Substrat très minéral (pouzzolane, sable grossier, un tiers de terreau au maximum), pot lourd et profond, rempotage tous les trois ou quatre ans seulement. Rentrer avant les premières gelées dans un local lumineux et hors gel, sans arroser.
Transplantation. Dracaena draco supporte très mal le déplacement une fois installé. Le système racinaire est étendu et cicatrise lentement. Choisir l’emplacement définitif dès la plantation.
Multiplication
Semis. C’est la méthode de référence. Débarrasser les graines de la pulpe charnue, semer en substrat très drainant à 20-25 °C. La germination intervient en deux à quatre semaines, sans stratification ni traitement préalable. Les semences perdent rapidement leur pouvoir germinatif : semer dans les mois qui suivent la récolte.
Bouturage. Les boutures de tête ou de section de branche s’enracinent, mais le taux de reprise est médiocre et la technique n’est employée qu’en dernier recours, pour sauver un sujet exceptionnel accidenté.
Maladies et ravageurs
Cochenilles farineuses et à bouclier. Les ravageurs les plus courants en culture. Les cochenilles farineuses (Planococcus citri notamment) colonisent la base des feuilles et les aisselles des rameaux ; les cochenilles à bouclier forment des encroûtements sur le vieux bois. Huile horticole ou traitement systémique.
Pourriture racinaire. Fatale, liée aux substrats retenant l’eau. Aucun traitement curatif : seule la prévention par le drainage fonctionne.
Pourritures internes du tronc. Les très vieux sujets à tronc creux sont vulnérables aux champignons lignivores. La ventilation du creux est le seul remède, comme au Drago Milenario.
Charançon du yucca (Scyphophorus acupunctatus). Ravageur redoutable des agaves et yuccas, à surveiller dans les jardins méditerranéens où ces plantes voisinent : son spectre d’hôtes s’étend aux agavoïdes au sens large.
Rusticité
Un sujet adulte, bien établi en sol drainant, supporte de courtes gelées de l’ordre de −5 à −7 °C. Le feuillage brûle dès −3 à −4 °C, et les dégâts sur les rameaux apparaissent plus bas. La combinaison froid + humidité, ou froid prolongé sur plusieurs jours, est bien plus destructrice qu’un minimum ponctuel plus bas par temps sec.
Les retours d’expérience convergent :
- Forum Au Cactus Francophone (France, février 2022) : sujet en pot laissé dehors, feuillage entièrement brûlé après un passage à −3 °C, le cœur restant sain — reprise possible depuis la souche.
- Forum Au Jardin (littoral Menton-Monaco, zone 10) : les sujets de la villa Maria Serena, jamais gelés, sont indemnes, alors que plusieurs exemplaires de la Côte d’Azur et du Jardin exotique de Monaco ont été abîmés par le gel.
- Forum Hardy Tropicals UK (sud de l’Angleterre, zone 9a) : survie d’un sujet en pleine terre à −5,6 °C, planté en sol extrêmement drainant contre un mur exposé au sud sous couvert de conifères ; le même contributeur signale la perte du bourgeon terminal par pourriture après un hiver humide sous véranda, à des températures pourtant plus clémentes.
Les jeunes plantes sont nettement plus sensibles que les sujets adultes. Les provenances marocaines (Dracaena draco subsp. ajgal), issues de stations gelant régulièrement entre 1 100 et 1 540 m d’altitude, sont vraisemblablement les plus rustiques, mais ce matériel est pratiquement introuvable dans le commerce horticole.
En pratique, la culture en pleine terre à long terme n’est fiable que sur les secteurs les plus abrités du littoral méditerranéen, en Corse, sur les côtes atlantiques ibériques et macaronésiennes, dans le sud de l’Italie, en Californie du Sud ou sur les littoraux australiens. Partout ailleurs, la culture en bac reste la solution raisonnable.
Usages traditionnels
La résine rouge qui suinte des blessures de l’écorce, le « sang-dragon » (sanguis draconis), est l’un des produits naturels les plus anciennement commercialisés au monde. Il faut la distinguer des résines homonymes, chimiquement différentes, tirées de Dracaena cinnabari à Socotra, des rotangs asiatiques du genre Calamus et de certains Croton sud-américains.
Les Guanches en faisaient un usage intensif : embaumement des morts, cicatrisation des plaies, teinture des étoffes, vernis, dentifrice. L’arbre était sacré ; les assemblées et les jugements se tenaient sous la couronne des sujets monumentaux.
À partir du XV<sup>e</sup> siècle, le sang-dragon entre dans la pharmacopée européenne comme astringent contre les plaies, les dysenteries et les affections respiratoires. Il figure dans le Herball de Gerard (1633) et le Theatrum Botanicum de Parkinson (1640). Les luthiers italiens du XVIII<sup>e</sup> siècle l’incorporaient à leurs vernis — la tradition l’attribue à Stradivarius lui-même, sans que la composition exacte de ses vernis ait jamais été établie. La résine sert encore aujourd’hui en photogravure, comme pigment, comme encens et en médecine traditionnelle, mais son importance commerciale s’est effondrée au profit des produits de synthèse.
Questions fréquentes
Combien de temps vit un dragonnier ? La longévité maximale reste débattue. Les estimations sérieuses pour le Drago Milenario se situent entre 800 et 1 000 ans. Les chiffres de plusieurs milliers d’années, encore souvent repris, ne reposent sur aucune méthode fiable — la plante ne produisant pas de cernes annuels.
Y a-t-il vraiment du « sang » à l’intérieur ? Oui. Une entaille dans l’écorce ou une branche cassée laisse suinter une résine rouge vif, mélange de flavonoïdes et de terpénoïdes propre au groupe des dragonniers.
Puis-je le cultiver dans le sud de la France ? Sur le littoral, oui : Var, Alpes-Maritimes, Corse, en sol très drainant et à l’abri des vents froids. Les sujets adultes passent la plupart des hivers sans protection. Les jeunes plants, sous 1 m de tronc, doivent être protégés dès −3 °C. À l’intérieur des terres ou en altitude, la culture en bac s’impose.
Pourquoi mon dragonnier ne se ramifie-t-il pas ? Parce qu’il n’a pas encore fleuri. La ramification ne survient qu’après la floraison terminale, soit rarement avant quinze ou vingt ans. Tailler la tête pour forcer la ramification est possible mais mutile durablement la plante.
Est-ce vraiment un arbre ? Botaniquement non. C’est une monocotylédone, plus proche de l’asperge et du muguet que d’un chêne. Elle atteint le port arborescent par croissance secondaire anormale, sans bois véritable, sans écorce véritable et sans cernes — l’un des plus beaux exemples de convergence évolutive vers la forme arborée.
Sites de référence
Référentiels nomenclaturaux et taxinomiques
POWO — Plants of the World Online, Royal Botanic Gardens Kew : nomenclature acceptée, synonymie complète et répartition indigène https://powo.science.kew.org/taxon/…
IPNI — International Plant Names Index : protologue et lieu de publication du nom https://www.ipni.org/…
Statut de conservation
Liste rouge de l’UICN : évaluation 2021, catégorie En danger (EN) https://www.iucnredlist.org/…
Répartition et observations de terrain
iNaturalist : observations géolocalisées de l’espèce et de ses trois sous-espèces https://www.inaturalist.org/…
Histoire culturelle et sang-dragon
Plant Humanities Lab (Dumbarton Oaks) : histoire du commerce de la résine et de l’iconographie du dragonnier https://phl.juncture-digital.io/dragon-tree
Retours d’expérience de culture
Au Cactus Francophone : dégâts du gel sur sujet en pot, février 2022 https://www.cactuspro.com/…
Au Jardin : comportement des sujets du littoral Menton-Monaco https://www.aujardin.org/…
Hardy Tropicals UK : culture en pleine terre en climat océanique frais https://www.hardytropicals.co.uk/…
Bibliographie
Benabid, A. & Cuzin, F. (1997). Dragon tree (Dracaena draco subsp. ajgal) populations in Morocco: taxonomical, biogeographical and phytosociological values. Comptes Rendus de l’Académie des Sciences, Série III, 320(3) : 267-277. [description originale de la sous-espèce marocaine]
García-Verdugo, C. et al. (2019). Pleistocene diversification, phylogeographic structure, and the human influence on the range of Macaronesian dragon trees. Perspectives in Plant Ecology, Evolution and Systematics, 39 : 125462.
García-Verdugo, C. et al. (2020). Iconic, threatened, but largely unknown: biogeography of the Macaronesian dragon trees (Dracaena spp.) as inferred from plastid DNA markers. Taxon, 69(2) : 217-233. [référence pour le clade macaronésien]
Jura-Morawiec, J. (2017). Atypical origin, structure and arrangement of secondary tracheary elements in the stem of the monocotyledonous dragon tree, Dracaena draco. Planta, 246(3) : 489-499. [anatomie de la croissance secondaire anormale]
Linné, C. (1767). Systema Naturae, éd. 12, 2 : 246. [combinaison nouvelle dans le genre Dracaena]
Maděra, P. et al. (2020). What we know and what we do not know about dragon trees? Forests, 11(2) : 236. [synthèse générale sur les dragonniers]
Marrero Rodríguez, Á. & Almeida Pérez, R. S. (2012). A new subspecies, Dracaena draco (L.) L. subsp. caboverdeana Marrero Rodr. & R.S. Almeida (Dracaenaceae) from Cape Verde Islands. International Journal of Geobotanical Research, 2 : 35-40.
Marrero Rodríguez, Á., Almeida Pérez, R. S. & González-Martín, M. (1998). A new species of the wild dragon tree, Dracaena (Dracaenaceae) from Gran Canaria and its taxonomic and biogeographic implications. Botanical Journal of the Linnean Society, 128(3) : 291-314. [description de Dracaena tamaranae]